세균 미세구획(BMC)은 반투과성 단백질 껍질 안에 대사 효소를 격리하여, 막 결합 소기관이 없는 세균이 핵심 생화학 반응을 수행할 수 있게 하는 단백질 기반 소기관이다. 껍질은 헥사머 BMC-H, 펜타머 BMC-P, 트리머 BMC-T 등 여러 상동 단백질로 이루어져 정교한 이코사헤드랄 격자를 형성한다. 최근 BMC를 나노바이오리액터로 엔지니어링하려는 시도가 늘면서 껍질 조립을 지배하는 인자 이해의 필요성이 대두되었다. 본 연구에서는 고속 원자력 현미경(HS-AFM)을 이용해 다양한 pH와 이온 강도에서 BMC-H의 자기조립 역학을 정량화하였다. 400 mM 염 농도에서 크고 단일층 패치 형성이 촉진되며, 중성 pH(≈7)에서 헥사머 첨가 및 제거 속도가 최대화됨을 발견했다. 또한 헥사머 시트에서 섬유형 배열로의 전이를 포착해 이들 단백질의 내재적 유연성을 확인했다. 이번 연구는 BMC 껍질 조립을 안정화하는 환경 조건의 상세한 지도를 제공하며, 합성 BMC 및 관련 나노소재의 합리적 설계에 기여할 것이다.
서론
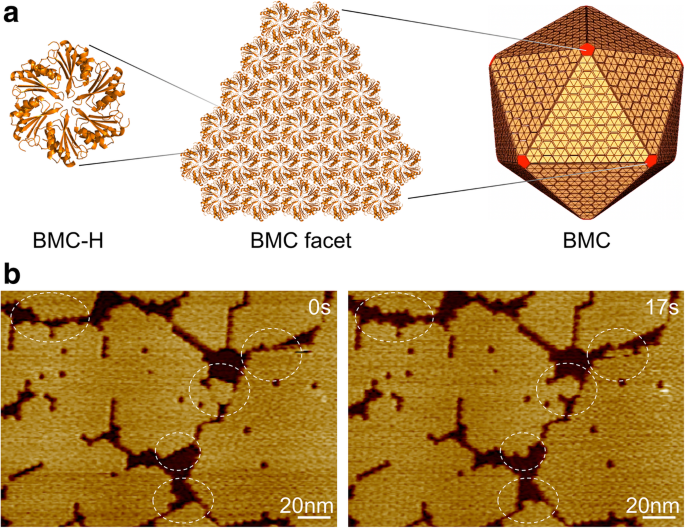
세균 미세구획(BMC)은 바이러스 캡시드와 유사한 단백질 기반 소기관으로 세균 문 전반에 널리 분포한다. 반투과성 단백질 껍질 안에 대사 효소를 캡슐화해, 막 결합 소기관이 없는 생물에서 생화학 경로를 분할한다. 껍질은 세 구조 단백질 클래스로 구성된다: BMC-H(Pfam00936), BMC-T(두 개의 Pfam00936 도메인), BMC-P(Pfam03319). BMC-H 헥사머가 껍질 면을 타일링하고, BMC-P 펜타머가 꼭짓점을 차지하며, BMC-T 유사헥사머가 투과성을 조절한다.
세균 미세구획, 껍질 조직, 자기조립. a 수백 개의 BMC 껍질 단백질 상동체가 자기조립해 이코사헤드랄 소기관을 형성. BMC-H 단백질(노란색)이 면을, BMC-P 단백질(빨간색)이 꼭짓점을 구성. b Hoch_5815 BMC-H 헥사머로 구성된 껍질 면의 AFM 위상도. HS-AFM으로 초 단위 동적 이벤트 관찰(원 안).
특정 단백질-단백질 상호작용이 BMC 껍질의 정밀한 구조를 결정한다. 헥사머 간 측면 접촉이 껍질 기하학의 주 결정인자다. BMC-H 상동체는 2차원 시트, 나노튜브, 필라멘트 구조로 조립될 수 있어 이 단백질 패밀리의 다재다능함을 보여준다. 모듈러 특성 덕분에 BMC는 나노바이오리액터, 대사 공학, 약물 전달용 스캐폴드로 주목받고 있다.
X선 결정학, 전자 현미경, 동적 광산란(DLS) 등 광범위한 구조적 특성화에도 불구하고, BMC 껍질의 실시간 조립 역학은 잘 이해되지 않고 있다. 고속 AFM은 최근 용액 상에서 BMC-H 자기조립을 가시화해 조립과 분해 이벤트를 서브초 분해능으로 드러냈다. 본 연구는 pH와 염 농도가 BMC-H 패치의 크기, 안정성, 역학에 미치는 영향을 체계적으로 탐구해 이러한 관찰을 확장한다.
실험 방법
시료 제조
정제된 BMC-H 단백질(Hoch_5815)은 Dr. Kerfeld(Lawrence Berkeley National Laboratory) 제공이다. 스톡 시료(~80 mg/mL, 50 mM Tris-HCl, pH 7.8, 100 mM KCl, 10 mM MgCl₂)를 원하는 버퍼에서 0.5 mg/mL로 희석해 이미징에 사용했다. 대조군 버퍼는 50 mM Tris-HCl(pH 7.8)과 10 mM MgCl₂로 구성했다.
원자력 현미경
시료를 신선하게 쪼갠 운모에 5분간 흡착시키고 해당 버퍼로 세척한 뒤, JPK NanoWizard ULTRA 속도 AFM으로 용액 상에서 이미징했다. 30 또는 40 Hz에서 AC 모드로 스캔했으며, ULTRA Speed 2.8 µm 스캐너와 Ultra-Short Cantilever USC-0.3 MHz 프로브를 사용했다. 고유 단백질 상호작용을 보존하기 위해 최소 로딩 힘(~100 pN)을 적용했다.
이미지 처리 및 분석
초기 이미지 분석은 JPK SPM Data Processing 소프트웨어를 사용했다. 동적 연구에는 Image SXM의 커스텀 매크로를 활용했다. 패치 크기는 512×512 픽셀 이미지(30 Hz)에서 추출했다: 이미지를 평탄화, 임계값 처리, 이진화해 단백질과 배경을 구분했다. 입자 분석으로 개별 패치의 표면적을 산출했다. 인접 패치는 3픽셀(~2 nm) 이상 간격으로 분리했다. 동적 이벤트는 256×256 픽셀 시계열(40 Hz, 프레임당 ≈6.4초)에서 정량화했다. 이진 차분 이미지로 첨가 또는 제거된 헥사머를 강조했으며, 이벤트 수(N)를 총 단백질 면적(A)과 경과 시간(T)으로 나누어 동적 속도(R)를 구했다:
R = N / (A × T)
데이터는 평균 ± 표준편차로 표시했다. 통계적 유의성은 다변량 또는 양방향 ANOVA로 평가했다.
결과
대장균에서 발현된 Hoch_5815 헥사머는 6중 대칭을 보이며 수초 내 단일층 시트를 형성한다—이코사헤드랄 BMC 껍질의 기본 빌딩 블록이다. HS-AFM은 이들 시트의 공간적 조직과 성장 및 용해 동역학을 모두 드러낸다.
pH 변화에 대한 반응
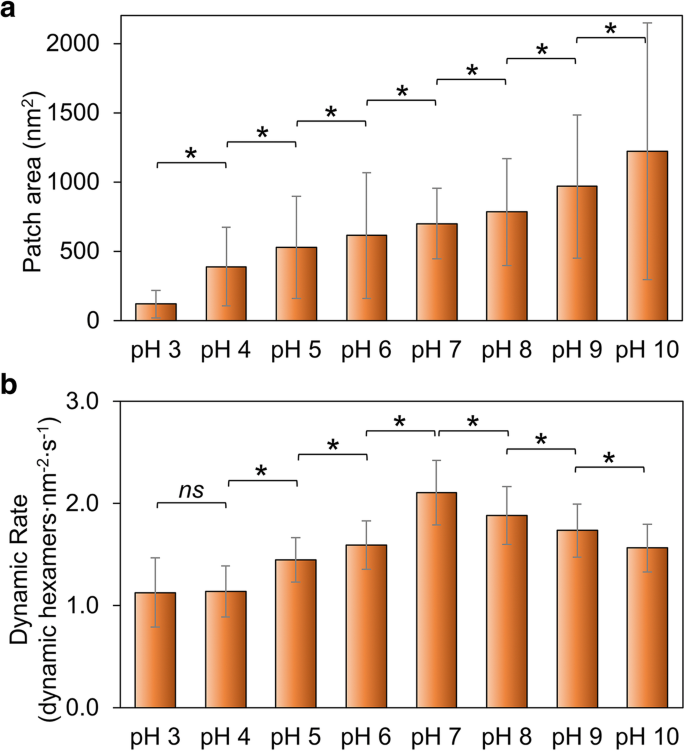
패치 크기는 pH 3에서 10으로 갈수록 점진적으로 증가해, 알칼리 조건이 헥사머 결합을 촉진함을 보였다. 중성 pH 7에서 동적 속도가 최댓값을 보였고, 산성 및 알칼리 환경에서는 급격히 떨어졌다. 이 경향은 pH 8에서 나노튜브를 형성하다 pH 10에서 분해하는 RmmH와는 다르다.
Hoch_5815 자기조립에 대한 환경 pH 효과. a 개별 패치 평균 표면적(n=50). b 평균 동적 이벤트 속도(n=50). *p<0.05, ns 유의미하지 않음(다변량 ANOVA).
헥사머-헥사머 계면의 정전기적 상호작용이 pH 의존성의 근간일 것이다. 산성 조건에서는 헥사머 결합이 감소하고, 알칼리 조건에서는 시트가 안정화되지만 전체 동적 교환은 줄어든다. 중성 pH는 안정성과 유연성 사이의 최적 균형을 제공한다.
염 농도 변화에 대한 반응
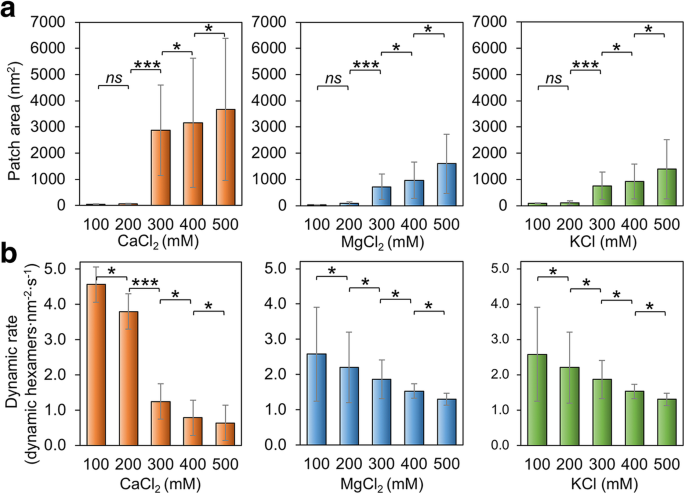
이온 강도를 100–500 mM(CaCl₂, MgCl₂, KCl)으로 높이면 패치 크기가 점진적으로 증가했다. 500 mM에서는 이중층 또는 다중층 시트가 관찰되었다. 200–300 mM 사이에서 패치 크기가 급격히 증가했으며, 특히 CaCl₂에서 두드러져 칼슘에 대한 높은 민감성을 시사했다. 동적 속도는 염 농도 증가에 따라 감소해, 측면 상호작용 강화와 헥사머 회전율 감소를 반영했다.
Hoch_5815 자기조립에 대한 염 농도 효과. a 100–500 mM CaCl₂, MgCl₂, KCl에서 평균 패치 면적(n=50). 200–300 mM 사이에서 유의미한 변화(***p<0.001, *p<0.05, ns 유의미하지 않음, 양방향 ANOVA). b 동일 조건에서 평균 동적 이벤트 속도. 100 mM 증가마다 동역학에 유의미한 변화(***p<0.001, *p<0.05, ns 유의미하지 않음, 양방향 ANOVA).
특히 400 mM의 모든 양이온 조건에서 가장 크고 안정적인 단일층 조립체가 형성되었으며, 조립 이벤트가 분해 이벤트보다 높은 비율을 보였다. 500 mM에서는 동역학이 더 감소하고 다중층 시트가 나타나 매우 안정적인 상호작용임을 나타낸다.
BMC-H 단백질 조립의 유연성
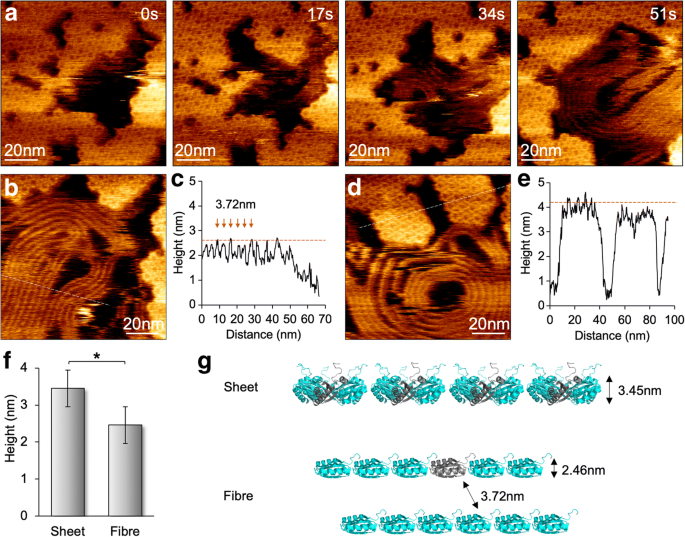
낮은 스캔 힘(~100 pN)을 사용해 단일 헥사머 수준에서 조립과 분해 이벤트를 모두 포착했다. pH 7.5, 10 mM MgCl₂ 조건에서 시트 분해와 공존하는 섬유형 구조를 가끔 관찰했다. 이 섬유들은 3.72 ± 0.31 nm 간격과 2.46 ± 0.22 nm 높이를 가지며, 온전한 헥사머 높이(3.45 ± 0.16 nm)보다 짧아 개별 단량체나 부분적으로 분해된 올리고머에서 기인함을 시사한다.
껍질 시트 조립과 함께 나타나는 섬유형 구조의 형성과 역학. a 시트 분해 중 섬유 출현. b 섬유의 AFM 위상도. c 단면에서 3.72 ± 0.31 nm 간격(n=30). d 헥사머 패치 위상도. e 단면에서 3.45 ± 0.16 nm 높이(n=25). f 섬유가 시트보다 유의미하게 낮음(*p<0.05, 양방향 ANOVA). g 제안 모델: 섬유는 단량체 Hoch_5815 사슬로 구성.
고찰
정량적 HS-AFM 분석은 BMC-H 자기조립이 환경 신호에 극도로 민감함을 입증했다. 중성 pH와 중간 이온 강도(≈400 mM)는 헥사머 패치의 크기와 동적 교환을 모두 최대화하는 조건을 만들며, 이는 많은 세균의 세포질 환경(pH 7.4–7.8, 이온 농도 100–400 mM)을 반영한다. 이는 껍질 단백질이 넓은 pH 범위에서 조립되지만 생리적 조건에서 최적의 역학을 보인다는 선행 관찰과 일치한다.
카르복시좀 껍질 단백질(CcmK) 등 다른 BMC 유형과 비교해도 공통 주제가 드러난다: 염 증가는 더 크고 질서 있는 조립을 촉진하지만, 과도한 이온 강도는 다중층 형성이나 관형 구조 분해로 이어질 수 있다. Hoch_5815가 CaCl₂와 MgCl₂에 다르게 반응하는 점은 이가 양이온이 정전기적 차폐나 특정 결합을 통해 헥사머 간 접촉을 조절함을 시사한다.
이러한 통찰은 엔지니어링된 BMC의 합리적 설계에 직접 적용 가능하다. 조립 중 pH와 이온 강도를 조절해 원하는 구조로 껍질을 유도할 수 있다—효소 캡슐화 최대화를 위한 단일층 시트, 구조적 강화를 위한 다중층 껍질 등. 또한 관찰된 섬유형 중간체는 새로운 나노섬유 템플릿으로 활용되거나 껍질 투과성 조절에 이용될 수 있다.
향후 연구는 헥사머-헥사머 계면의 계산 모델링과 실험적 AFM 데이터를 통합해 BMC 조립의 열역학적 지형을 해부해야 한다. 이러한 결합 접근법은 자연 BMC가 변동하는 세포 환경에 어떻게 적응하는지 이해를 깊게 하고, 견고하고 프로그래머블한 나노구조체 구축을 안내할 것이다.
결론
고속 AFM으로 생리학적으로 관련 있는 조건에서 BMC-H 헥사머의 자기조립 지도를 작성했다. 400 mM 염에서 크고 안정적인 단일층 패치가 선호되며, 중성 pH는 헥사머의 동적 교환을 촉진한다. 섬유형 조립체의 발견은 BMC 껍질 단백질의 내재적 가소성을 더욱 부각한다. 이러한 발견은 단순 pH 또는 염 농도 변화로 조절 가능한 BMC 기반 나노바이오리액터 및 기타 생체소재 엔지니어링을 위한 정량적 토대를 마련한다.