마이크로RNA(miRNA)가 뇌허혈/재관류 손상(CI/RI)에서 수행하는 역할에 대한 연구가 광범위하게 이루어졌지만, CI/RI에서 miR-326-5p의 구체적인 메커니즘은 여전히 불분명합니다. 따라서 이 연구는 CI/RI에서 miR-326-5p/신호 전달 및 전사 활성화 인자-3(STAT3) 축의 메커니즘을 규명하는 것을 목표로 했습니다. 원발 쥐 피질 신경세포에서의 산소-포도당 결핍(OGD) 모델과 Sprague-Dawley 쥐에서의 중대뇌동맥 폐색(MCAO) 모델을 각각 체외 및 체내에서 CI/RI를 모방하기 위해 확립했습니다. OGD 처리된 신경세포와 MCAO 쥐에서 기능 상실 및 획득 실험을 수행했습니다. 이후 OGD 처리된 신경세포에서 생존율, 세포자살, 산화 스트레스, 미토콘드리아 막 전위를 검사했으며, MCAO 쥐의 뇌 조직에서 병리학적 변화, 세포자살, 미토콘드리아 막 전위를 검사했습니다. OGD 처리된 신경세포와 MCAO 쥐의 뇌 조직에서 미토푸신-2(Mfn2), miR-326-5p, STAT3 발현을 검출했습니다. OGD 처리된 신경세포와 MCAO 쥐의 뇌 조직에서 Mfn2와 miR-326-5p는 감소했고 STAT3는 증가했습니다. miR-326-5p는 STAT3 발현을 표적으로 하여 음성 조절했습니다. miR-326-5p를 복원하거나 STAT3를 감소시키면 OGD 처리된 신경세포에서 생존율을 강화하고, 세포자살과 산화 스트레스를 억제하며, 미토콘드리아 막 전위와 Mfn2 발현을 증가시켰습니다. miR-326-5p를 상향 조절하거나 STAT3를 하향 조절하면 MCAO 쥐의 뇌 조직에서 병리학적 변화를 완화하고, 세포자살을 억제하며, 미토콘드리아 막 전위와 Mfn2 발현을 높였습니다. 이 연구는 miR-326-5p 상향 조절 또는 STAT3 하향 조절이 Mfn2 발현을 높여 CI/RI를 예방함을 규명했습니다.
서론
뇌허혈/재관류 손상(CI/RI)은 허혈성 뇌졸중 후 발생하는 일종의 뇌 손상입니다[1]. 뇌 I/R의 가장 특징적인 특징은 초기 일시적 뇌허혈에 이은 재관류입니다[2]. CI/RI는 신경세포 세포자살을 활성화하고 해마와 피질 손상을 초래합니다[3]. 현재 CI/RI에 대한 가장 일반적인 임상 적용은 혈전 용해 요법입니다[4]. 그러나 재관류는 활성산소종(ROS) 생성을 증가시켜 세포내 DNA 손상, 산화 스트레스 관련 손상, 단백질 산화, 지질 과산화를 유발하여 혈액-뇌 장벽 악화와 부종을 더욱 악화시킵니다[5]. 따라서 CI/RI에 대한 새로운 표적 치료 옵션을 찾는 것이 최우선 과제입니다.
마이크로RNA(miRNA)는 CI/RI에서 잠재적이고 예후적인 역할을 하는 것으로 광범위하게 간주됩니다[6, 7]. 예를 들어, 한 논문은 miR-202-5p가 신경 손상과 신경학적 결손을 완화하고, 중대뇌동맥 폐색(MCAO) 모델 쥐에서 허혈 손상 시 산소-포도당 결핍(OGD) 유도 세포 손상을 개선함을 입증했습니다[8]. 또한 miR-98 상향 조절이 I/R 뇌졸중 쥐의 신경학적 결과를 개선함이 밝혀졌습니다[9], miR-451 과발현이 CI/RI 쥐에서 허혈성 뇌 세포자살을 완화함이 확인되었습니다[10]. 구체적으로 miR-326-5p는 내피 전구 세포에 대한 혈관신생 촉진 능력이 있으며 급성 심근경색 후 심장 기능을 개선할 수 있습니다[11]. 그러나 CI/RI에서 miR-326-5p에 초점을 맞춘 연구는 아직 초기 단계입니다. 신호 전달 및 전사 활성화 인자(STAT)는 CI/RI에 의해 활성화되는 독특한 단백질 가족입니다[12]. STAT3가 생물정보학 웹사이트에서 miR-326-5p의 표적으로 예측되었으므로, 우리는 CI/RI에서 miR-326-5p 매개 STAT3의 역할을 연구했습니다. STAT3는 친염증 매개체 방출로 허혈성 신경염증 과정과 이차적 뇌 손상을 악화시킵니다[13, 14]. 구체적으로 야누스 활성화 키나아제 2(JAK2)/STAT3 경로는 CI/RI에 의해 유도된 세포자살 차단에 기능적 역할을 합니다[15]. 미토푸신-2(Mfn2)는 심뇌혈관 I/RI를 예방할 수 있는 미토콘드리아 융합 인자이며 허혈성 뇌 손상에서 저산소증 유도 신경세포 세포자살을 개선합니다[17]. 또한 Mfn2가 CI/RI에 보호 효과를 발휘함이 기록되었습니다[18].
요약하자면, miR-326-5p와 STAT3의 CI/RI에서의 결합된 역할을 발견한 심층 연구는 부족합니다. 이를 고려하여 miR-326-5p가 STAT3를 표적으로 하여 CI/RI를 완화한다는 가설로 이 연구를 시작했습니다.
재료 및 방법
윤리 성명
실험은 양저우 대학 부속병원 및 양저우 대학의 동물 관리 및 사용 위원회의 승인을 받았으며, 양저우 대학 부속병원 및 양저우 대학의 실험용 쥐 관리 및 사용 지침에 따라 수행되었습니다.
실험 동물
양저우 대학 비교의학센터(중국 양저우)에서 얻은 6~8주령, 250±30g의 수컷 성체 Sprague-Dawley 쥐를 특정 병원체 없는 환경에서 자유롭게 사료와 물을 섭취하며, (24±1)°C, (50±5)% 습도, 12시간 명/암 주기 조건으로 유지했습니다.
세포 분리 및 동정
쥐를 경부 탈골로 안락사시키고 뇌를 1mm³로 잘라 세포 현탁액을 만들었습니다. 이를 0.4% 트립신 블루 용액과 9:1 비율로 혼합(최종 트립신 블루 농도 0.04%)하고 혈구계산기로 세포 밀도와 생존율을 계산했습니다. 세포(1×10⁶ cells/mL)를 L-폴리라이신(0.1mg/mL)으로 미리 코팅한 세포 배양 플라스크에 플라스크당 5×10⁶개 세포로 파종했습니다. 세포가 벽에 부착되면 갱신된 배지(NeurobasalA + B27 + L-글루타민)로 배양하고 6~7일간 지속적으로 배양하며 2~3일마다 배지의 절반을 교체했습니다.
세포 동정: 쥐 피질 신경세포를 이용해 신경세포 슬라이드를 준비하고, 1차 토끼 항 쥐 네스틴(NES) 다클론 항체(1:200) 및 플루오레세인 이소티오시아네이트(FITC) 표지 염소 항 토끼 면역글로불린 G(1:50, 둘 다 Cell Signaling Technology, Beverly, MA, USA)로 배양했습니다. 이후 항형광 소멸제로 봉입하고 형광 현미경으로 관찰했습니다.
OGD 모델 확립
신경세포를 포도당이 없는 Earle 용액에서 배양하고 95% N₂와 5% CO₂ 혼합 가스에 노출시켰습니다. 30분간 양압 환기 후 세포가 배양되는 저산소 환경이 형성되었습니다(체외에서 OGD로 허혈 모사). 90분 배양 후 포도당이 없는 Earle 용액을 제거하고 유지 배지로 배양했습니다(체외에서 산소-포도당 재관류로 재관류 모사). 정상 배지를 정상 산소 조건에서 배양한 것을 대조군으로 했습니다.
리포펙타민 2000(Invitrogen; Thermo Fisher Scientific)을 사용하여 스크램블 올리고뉴클레오티드, miR-326-5p 아고미르, STAT3 shRNA 또는 miR-326-5p 아고미르와 pcDNA-STAT3를 원발 쥐 신경세포에 형질주입하고 48시간 후 역전사 정량적 중합효소 연쇄반응(RT-qPCR) 또는 웨스턴 블롯으로 형질주입 효율을 검사했습니다.
MTT 분석
신경세포를 1×10⁶ cells/mL 현탁액으로 만들고 0, 24, 48시간 각각 배양했습니다. 무균 환경에서 신경세포를 10% MTT 용액에서 2~4시간 배양하고 150µL 포르마잔 용해액(디메틸 설폭사이드)을 첨가하여 결정이 충분히 용해될 때까지 기다렸습니다. 마이크로플레이트 리더로 570nm에서 광학 밀도(OD) 값을 측정했습니다.
유세포 분석기 세포자살 분석
신경세포를 0.25% 트립신으로 분리하고 2000rpm에서 원심분리한 후 PBS에 재현탁했습니다. 다시 2000rpm에서 원심분리하고 펠릿을 결합 버퍼에 재현탁한 후 5µL Annexin V-FITC와 5µL 요오드화 프로피듐(PI)으로 순차적으로 배양했습니다. 유세포 분석기를 적용하여 세포자살률을 검출했습니다.
JC-1 미토콘드리아 막 전위 검출
6웰 플레이트의 세포를 PBS로 세척하고 1mL 세포 배양 배지와 1mL JC-1 염색 작업 용액(50µL JC-1, 8mL 초순수, 2mL JC-1 염색 버퍼)(SolarbioScience, 중국 베이징)을 첨가하여 15분간 배양했습니다. 1×JC-1 염색 버퍼는 증류수 4mL와 JC-1 염색 버퍼 1mL로 구성했습니다. 배양 후 세포를 트립신화하고 JC-1 버퍼에 재현탁하여 유세포 분석기에서 검사했습니다. 녹색 형광의 상대적 비율을 계산했습니다.
산화 스트레스 검출
세포내 ROS 수준은 2,7-디클로로플루오레세인 디아세테이트(DCF-DA) 검출 키트(Abcam)로 측정했습니다. 간단히 신경세포를 0.25% 트립신으로 분리하고 재현탁한 후 10µM DCF-DA로 30분간 배양했습니다. 이후 495nm/529nm의 여기/방출광에서 DCF 형광을 형광 분광광도계(BD Biosciences)로 측정했습니다.
세포내 말론디알데히드(MDA), 글루타티온(GSH) 함량 및 슈퍼옥사이드 디스무타제(SOD) 활성은 상업용 분석 키트(Beyotime Biotechnology Co., 중국 상하이)를 사용하여 화학적 비색법으로 검출했습니다. OD 값은 마이크로플레이트 리더로 측정했습니다.
쥐 모델 확립
쥐를 펜토바르비탈 나트륨(50µg/kg) 복강 주사로 마취했습니다. 목에 정중 절개를 하고 외경동맥을 결찰하고 총경동맥을 동맥 클립으로 차단했습니다. 3-0 실리콘 코팅 모노필라멘트 나일론 봉합사를 내경동맥에 가볍게 저항이 느껴질 때까지 조심스럽게 삽입했습니다. 90분간 일과성 뇌허혈 후 봉합사를 제거하고 24시간 추가로 재관류를 수행했습니다. 샤군에는 동일한 처리를 했으나 봉합사가 내경동맥에 들어가지 않았습니다. 수술 중 항온 침대를 사용하여 직장 온도를 37±0.5°C로 유지했습니다[19].
쥐를 6개 그룹(n=6)으로 나누고 MCAO 모델 확립 전 측뇌실에 플라스미드 또는 miR을 주입했습니다: 샤군, MCAO군(모델 쥐), NC군(측뇌실에 5µL 스크램블 올리고뉴클레오티드[100µM] 주입한 모델 쥐), miR-326-5p 아고미르군(측뇌실에 5µL miR-326-5p 아고미르[100µM] 주입한 모델 쥐), sh-STAT3군(측뇌실에 5µL STAT3 간섭 벡터[100µM] 주입한 모델 쥐), miR-326-5p 아고미르 + oe-STAT3군(측뇌실에 5µL miR-326-5p 아고미르[100µM]와 5µL STAT3 과발현 벡터[100µM] 주입한 모델 쥐)[20, 21].
시료 채취
쥐를 마취로 안락사시키고 심장을 관류하여 뇌 전체를 얻었습니다. 뇌 손상 조직을 1×1×1mm³ 조직 조각으로 잘라 파라핀 절편 제작, RT-qPCR, 웨스턴 블롯 분석, 미토콘드리아 막 전위 검출에 사용했습니다.
대뇌피질 미토콘드리아 막 전위 검출
SD 쥐의 대뇌피질을 분리하고 1mm³로 잘랐습니다. 조직 블록을 300메시 나일론 망 위에 놓고 PBS를 첨가했습니다. 세포 현탁액을 1000r/min에서 원심분리하고 70% 에탄올을 첨가한 후 다시 1000r/min에서 원심분리했습니다. 이후 샘플을 1mL PBS에 재현탁하고 현탁액(1×10⁶ 세포, 100µL)을 로다민123 염색 용액(10µL, 5µg/mL)과 반응시켜 488nm에서 유세포 분석기로 분석했습니다.
HE 염색
쥐 뇌 조직을 4% 파라포름알데히드에 24시간 담그고 파라핀 절편을 제작하여 4µm로 자르고 40°C 물에 펴서 60°C에서 구웠습니다. 통상적으로 탈파라핀화 및 수화 후 HE 염색 용액으로 염색했습니다. HE 염색 후 손상된 신경세포는 핵 수축, 세포 부종, 소포화, 핵 흑색화를 보였습니다. 광학 현미경(Nikon, 일본)으로 이미지를 얻고 허혈성 피질의 생존 신경세포 수(mm²)를 계산했습니다.
TUNEL 염색
파라핀 절편을 탈파라핀화하고 100%, 95%, 80%, 70% 알코올로 탈수했습니다. 그런 다음 4% 파라포름알데히드에 담근 후 0.1% 트리톤 X-100 구연산 버퍼로 20분간 배양하고 TUNEL 반응 혼합물로 1~1.5시간 배양했습니다. 다음으로 과산화효소 용액과 디아미노벤지딘(DAB)으로 현상하고 헤마톡실린으로 대조 염색한 후 그라데이션 알코올로 탈수, 투과, 중성 검으로 봉입했습니다. 광학 현미경으로 관찰하여 TUNEL 양성 세포를 계산했습니다. 핵 내 갈색 황색 입자를 TUNEL 양성 세포(세포자살 세포)로 정의했습니다.
면역조직화학
절편을 탈파라핀화, 수화하고 구연산 항원 회수 후 3% H₂O₂로 내생 카탈라제를 차단했습니다. 각 절편에 염소 혈청(50µL)을 첨가하고 1차 항체(50µL)로 배양한 후 2차 항체(50µL)와 과산화효소 표지 스트렙타비딘(50µL)과 반응시켰습니다. DAB로 현상하고 헤마톡실린으로 대조 염색한 후 그라데이션 알코올 탈수, 자일렌 투과, 중성 검 봉입했습니다. 현미경으로 관찰했습니다(허혈성 뇌 조직의 세포질 또는 핵이 노란색 또는 갈색 황색 입자). OD 값을 측정하고 평균냈습니다.
RT-qPCR
조직과 세포에서 총 RNA 추출은 Trizol(Invitrogen)로 수행했습니다. mRNA 발현은 SYBR Green PCR Mix(Applied Biosystems, CA, USA)와 QuantStudio TM 6Flex 실시간 PCR 시스템(Applied Biosystems)을 사용한 qPCR로 분석했습니다. 특정 줄기-루프 역전사 프라이머와 순방향/역방향 프라이머(BioTNT, 중국 상하이)를 설계하여 miRNA 수준을 분석했습니다. 표 1에 모든 프라이머를 나열했습니다. 2^(-ΔΔCT) 법을 사용하여 miRNA 또는 mRNA 수준을 계산했습니다.
웨스턴 블롯 분석
단백질 샘플을 10% SDS-폴리아크릴아미드 겔 전기영동으로 분리하고 폴리비닐리덴 플루오라이드(PVDF) 막에 전이시켰습니다. 이후 Tris 함유 염수에 5% 탈지분유로 PVDF 막을 차단한 후 1차 항체로 탐침하고 2시간 동안 2차 항체로 재탐침했습니다. 그런 다음 니트로블루 테트라졸륨 클로라이드와 5-브로모-4-클로로-3-인돌릴 포스페이트를 함유한 알칼리성 인산염 버퍼로 단백질 밴드를 분석하고 ImageJ 소프트웨어(NIH, Bethesda, MD, USA)로 정량화했습니다. 주요 항체는 STAT3(1:1000), Mfn2(1:1000, Abcam, MA, USA), 글리세랄데히드-3-인산 탈수소효소(GAPDH)(1:1000, Cell Signaling Technology, Beverly, MA, USA)였습니다.
이중 루시페라아제 보고자 유전자 분석
miR-326-5p 야생형(WT) 또는 돌연변이(Mut) 결합 부위를 포함하는 STAT3 3'UTR을 pmirGLO 벡터(Promega, WI, USA)에 클로닝하여 STAT3-WT와 STAT3-Mut로 명명했습니다. 세포를 24웰 플레이트에 2×10⁴ cells/well 밀도로 파종하고 70% 컨플루언시에서 100ng의 STAT3-WT 또는 STAT3-Mut 루시페라아제 벡터와 50nM miR-326-5p 아고미르 또는 아고미르 NC를 공동 형질주입했습니다. 루시페라아제 활성은 이중 루시페라아제 보고자 분석 시스템(Promega Corporation, WI, USA)으로 측정했습니다.
통계 분석
SPSS 21.0(IBM, NY, USA) 통계 소프트웨어를 사용하여 데이터를 분석했습니다. 데이터는 평균±표준편차(SD)로 표현했습니다. 두 그룹 간 차이는 Student's t-test로 분석했고, 다중 비교는 일원 분산 분석(ANOVA) 후 Tukey의 사후 검정으로 분석했습니다. P는 양측 검정을 나타내며, P<0.05를 통계적 유의성으로 간주했습니다.
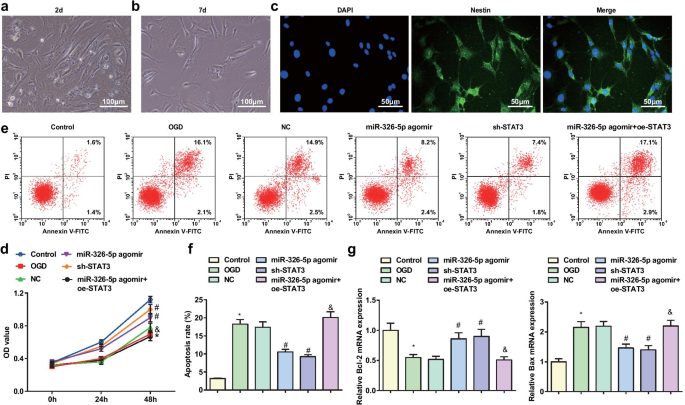
일주일 배양 후 쥐 피질 신경세포가 분화되고 성숙했습니다. 현미경적으로 신경세포는 더 큰 세포체, 더 투명한 세포질, 낮은 밀도의 큰 핵, 강한 굴절률을 보였습니다. 세포체는 원추형 또는 원형이었고 수상돌기는 어긋나며 벽에 부착되었습니다(그림 1a, b). NES는 뇌 신경세포의 특이적 화학적 표지자로 면역형광 분석을 통해 높은 특이성으로 신경세포를 위치시킬 수 있습니다. 신경세포가 특이적으로 NES에 결합하여 녹색 형광을 보였습니다(그림 1c).
miR-326-5p 상향 조절 또는 STAT3 하향 조절이 OGD 처리된 피질 신경세포의 세포자살을 완화. a 2일 부착 배양된 뇌 신경세포(스케일 바: 100µm); b 7일 부착 배양된 뇌 신경세포(스케일 바: 100µm); c 7일 부착 배양된 NES 면역형광 염색 뇌 신경세포(스케일 바: 50µm); d MTT 분석으로 측정한 OGD 처리된 피질 신경세포 생존율; e 유세포 분석으로 검출한 OGD 처리된 피질 신경세포 세포자살; f OGD 처리된 피질 신경세포 세포자살률; g OGD 처리된 피질 신경세포에서 Bcl-2 및 Bax mRNA 발현; *P<0.05 대조군 대비; #P<0.05 NC군 대비; &P<0.05 miR-326-5p 아고미르군 대비
MTT 분석으로 피질 신경세포 생존율을 검출했습니다(그림 1d). 결과는 대조군 및 miR-326-5p 아고미르군 대비 OGD군과 miR-326-5p 아고미르 + oe-STAT3군에서 쥐 피질 신경세포 생존율이 손상되었으나, NC군 대비 miR-326-5p 아고미르군과 sh-STAT3군에서 향상됨을 보여주었습니다(모든 P<0.05).
유세포 분석기로 쥐 피질 신경세포 세포자살을 결정하고 RT-qPCR로 Bcl-2 및 Bax mRNA 발현을 측정했습니다(그림 1e-g). 결과는 대조군 및 miR-326-5p 아고미르군 대비 OGD군과 miR-326-5p 아고미르 + oe-STAT3군에서 세포자살률이 증가하고 Bcl-2 발현이 감소하며 Bax 발현이 증가함을 설명했습니다(모든 P<0.05). NC군 대비 miR-326-5p 아고미르군과 sh-STAT3군에서 세포자살률이 낮아지고 Bcl-2 수준이 상승하며 Bax 수준이 억제되었습니다(모든 P<0.05).
miR-326-5p 상향 조절 또는 STAT3 하향 조절이 OGD 손상 후 피질 신경세포에서 Mfn2 및 미토콘드리아 막 전위 수준 증가
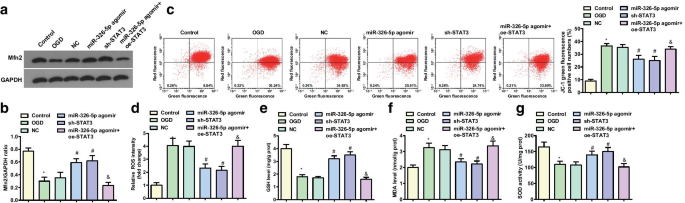
OGD 처리된 피질 신경세포에서 Mfn2 발현을 웨스턴 블롯 분석으로 검출했습니다(그림 2a, b). 대조군 및 miR-326-5p 아고미르군 대비 OGD군과 miR-326-5p 아고미르 + oe-STAT3군에서 Mfn2 단백질 발현이 감소했으나, NC군 대비 miR-326-5p 아고미르군과 sh-STAT3군에서 증가했습니다(모든 P<0.05).
miR-326-5p 상향 조절 또는 STAT3 하향 조절이 OGD 처리된 피질 신경세포에서 Mfn2 및 미토콘드리아 막 전위 수준 증가. a, b OGD 처리된 피질 신경세포에서 Mfn2 단백질 발현; c OGD 처리된 피질 신경세포에서 미토콘드리아 막 전위 수준 JC-1 유세포 분석; d miR-326-5p 상향 조절 또는 STAT3 하향 조절 후 OGD 처리된 피질 신경세포 ROS 함량; e miR-326-5p 상향 조절 또는 STAT3 하향 조절 후 OGD 처리된 피질 신경세포 GSH 활성; f miR-326-5p 상향 조절 또는 STAT3 하향 조절 후 OGD 처리된 피질 신경세포 MDA 함량; g miR-326-5p 상향 조절 또는 STAT3 하향 조절 후 신경세포 SOD 활성; *P<0.05 대조군 대비; #P<0.05 NC군 대비; &P<0.05 miR-326-5p 아고미르군 대비
JC-1로 검출한 미토콘드리아 막 전위는(그림 2c, d) 대조군 및 miR-326-5p 아고미르군 대비 OGD군과 miR-326-5p 아고미르 + oe-STAT3군에서 미토콘드리아 막 전위 수준이 감소했으며(모든 P<0.05), NC군 대비 miR-326-5p 아고미르군과 sh-STAT3군에서 증가했습니다(모든 P<0.05).
OGD 처리된 피질 신경세포에서 ROS 및 MDA 함량, GSH 및 SOD 활성을 측정했고, 결과는 대조군 및 miR-326-5p 아고미르군 대비 OGD군과 miR-326-5p 아고미르 + oe-STAT3군에서 ROS 및 MDA 함량이 증가하고 GSH 및 SOD 활성이 손상됨을 나타냈습니다(모든 P<0.05). NC군 대비 miR-326-5p 아고미르군과 sh-STAT3군에서 ROS 및 MDA 함량이 감소하고 GSH 및 SOD 활성이 강화되었습니다(모든 P<0.05)(그림 2e-g).
miR-326-5p 상향 조절 또는 STAT3 하향 조절이 CI/RI 쥐에서 피질 신경세포 병리적 손상 완화 및 세포자살 억제
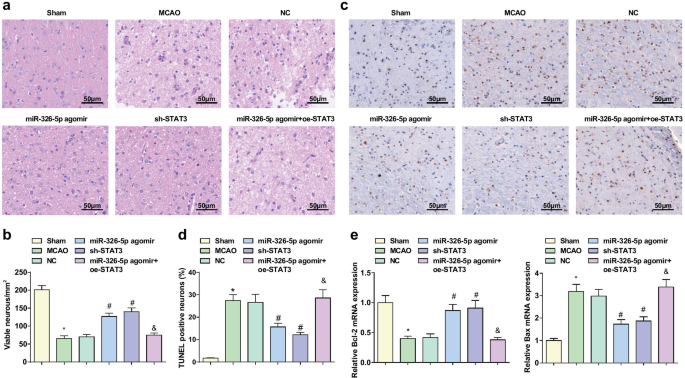
HE 염색으로 뇌 조직의 병리적 손상을 관찰했습니다(그림 3a, b). 샤군에서는 신경세포가 정상 구조로 깔끔하게 배열되어 옅은 붉은 세포질, 파란 핵, 선명한 소핵을 보였습니다. MCAO군, NC군, miR-326-5p 아고미르 + oe-STAT3군에서는 괴사 외에도 신경세포가 무질서하게 배열되고 더 어둡게 염색되었으며, 핵막 파열, 세포 구조 소실, 핵축축, 진한 염색 핵, 대량 용해가 관찰되었습니다. miR-326-5p 아고미르군과 sh-STAT3군에서는 신경세포 부종이 완화되고 신경세포가 질서 있게 배열되었으며 괴사 세포가 감소하여 MCAO군과 NC군에 비해 더 나은 상태임을 나타냈습니다.
miR-326-5p 상향 조절 또는 STAT3 하향 조절이 CI/RI 쥐에서 피질 신경세포 병리적 손상 완화 및 세포자살 억제. a HE 염색으로 관찰한 MCAO 쥐 뇌 조직 병리적 손상(스케일 바: 50µm); b miR-326-5p 상향 조절 또는 STAT3 하향 조절 후 MCAO 쥐 뇌 조직 온전한 신경세포 수; c TUNEL 염색으로 검출한 MCAO 쥐 뇌 조직 신경세포 세포자살(스케일 바: 50µm); d miR-326-5p 상향 조절 또는 STAT3 하향 조절 후 MCAO 쥐 뇌 조직 TUNEL 양성률; e miR-326-5p 상향 조절 또는 STAT3 하향 조절 후 MCAO 쥐 뇌 조직 Bcl-2 및 Bax mRNA 발현; *P<0.05 샤군 대비; #P<0.05 NC군 대비; &P<0.05 miR-326-5p 아고미르군 대비
TUNEL 염색으로 신경세포 세포자살을 검출하고 RT-qPCR로 뇌 조직에서 Bcl-2 및 Bax mRNA 발현을 측정했습니다. 결과는(그림 3c-e) 샤군 및 miR-326-5p 아고미르군 대비 MCAO군과 miR-326-5p 아고미르 + oe-STAT3군에서 TUNEL 양성률이 증가하고 Bcl-2 mRNA 발현이 감소하며 Bax mRNA 발현이 증가함을 보여주었습니다(모든 P<0.05). NC군 대비 miR-326-5p 아고미르군과 sh-STAT3군에서 TUNEL 양성률과 Bax mRNA 발현이 낮고 Bcl-2 mRNA 발현이 높았습니다(모든 P<0.05).
miR-326-5p 상향 조절 또는 STAT3 하향 조절이 CI/RI 쥐 뇌 조직에서 미토콘드리아 막 전위 수준 증가
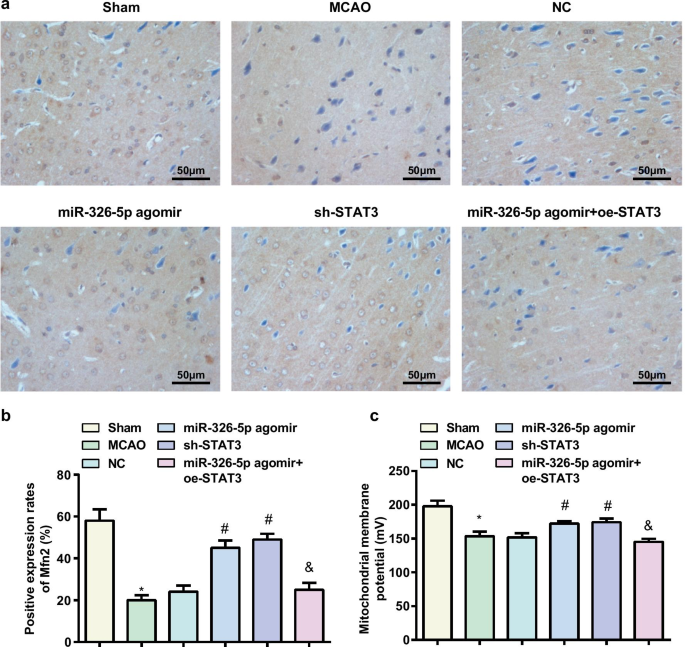
쥐 뇌 조직에서 Mfn2 단백질 발현 검출을 면역조직화학으로 수행했고, 결과는(그림 4a, b) 샤군 및 miR-326-5p 아고미르군 대비 MCAO군과 miR-326-5p 아고미르 + oe-STAT3군에서 Mfn2 단백질 발현이 낮았으며, NC군 대비 miR-326-5p 아고미르군과 sh-STAT3군에서 더 높았습니다(모든 P<0.05).
miR-326-5p 상향 조절 또는 STAT3 하향 조절이 CI/RI 쥐 뇌 조직에서 미토콘드리아 막 전위 수준 증가. a 쥐 뇌 조직에서 면역조직화학으로 검출한 Mfn2 발현(스케일 바: 50µm); b miR-326-5p 상향 조절 또는 STAT3 하향 조절 후 MCAO 쥐 뇌 조직 Mfn2 양성 세포 수; c miR-326-5p 상향 조절 또는 STAT3 하향 조절 후 MCAO 쥐 뇌 조직 신경세포 미토콘드리아 막 전위; *P<0.05 샤군 대비; #P<0.05 NC군 대비; &P<0.05 miR-326-5p 아고미르군 대비
미토콘드리아 막 전위 수준 검출 결과(그림 4c) 샤군 및 miR-326-5p 아고미르군 대비 MCAO군과 miR-326-5p 아고미르 + oe-STAT3군에서 미토콘드리아 막 전위 수준이 감소했으나, NC군 대비 miR-326-5p 아고미르군과 sh-STAT3군에서 증가했습니다(모든 P<0.05).
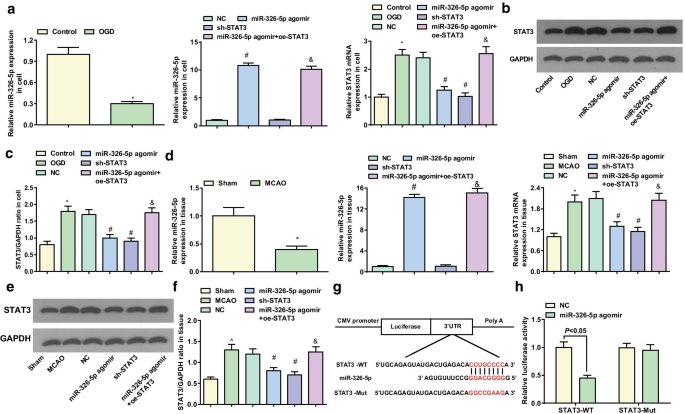
miR-326-5p가 STAT3를 표적으로 함. a 체외 OGD 처리된 피질 신경세포에서 miR-326-5p 및 STAT3 mRNA 발현; b, c 체외 OGD 처리된 피질 신경세포에서 STAT3 단백질 발현; d 체내 MCAO 쥐 뇌 조직에서 miR-326-5p 및 STAT3 mRNA 발현; e, f 체내 MCAO 쥐 뇌 조직에서 STAT3 단백질 발현; g 생물정보학 소프트웨어로 예측된 miR-326-5p와 STAT3 결합 부위; h 이중 루시페라아제 보고자 유전자 분석으로 검증된 miR-326-5p와 STAT3 표적 관계; 그림 a-c에서 *P<0.05 대조군 대비; #P<0.05 NC군 대비; &P<0.05 miR-326-5p 아고미르군 대비. 그림 d-f에서 *P<0.05 샤군 대비; #P<0.05 NC군 대비; &P<0.05 miR-326-5p 아고미르군 대비
체내 뇌 조직에서 샤군 대비 MCAO군에서 miR-326-5p 저하와 STAT3 상승이 나타났습니다(둘 다 P<0.05). NC군 대비 miR-326-5p 아고미르군에서 miR-326-5p 발현 상승과 STAT3 발현 감소가 나타났습니다(둘 다 P<0.05). sh-STAT3군에서 STAT3 발현 감소(P<0.05). miR-326-5p 아고미르군 대비 miR-326-5p 아고미르 + oe-STAT3군에서 STAT3 발현 상승(P<0.05)(그림 5d-f).
DIANA와 miRDB 소프트웨어로 STAT3 3'UTR에서 잠재적 miR-326-5p 표적 부위를 찾았습니다(그림 5g). WT miR-326-5p 결합 부위와 Mut 결합 부위를 포함하는 STAT3 3'UTR을 구성하여 pmirGLO 플라스미드에 삽입했습니다. miR-326-5p의 STAT3 3'UTR 결합을 루시페라아제 보고자 분석으로 추가 검증했습니다. 루시페라아제 보고자 분석 결과 miR-326-5p 아고미르가 STAT3-WT의 상대적 루시페라아제 활성을 감소시켰으나 STAT3-Mut에는 영향을 주지 않았습니다(그림 5h). 이는 STAT3가 miR-326-5p의 직접적 표적 유전자임을 시사합니다.
토론
CI/RI는 뇌혈관 사망의 주요 원인입니다[22]. miRNA가 CI/RI에 관여함이 제시되었습니다[23]. 그러나 CI/RI에서 miR-326-5p 관련 메커니즘에 대한 포괄적 이해는 여전히 불충분합니다. 따라서 이 연구는 miR-326-5p와 STAT3의 결합된 상호작용에 중점을 두고 CI/RI에서 miR-326-5p의 구체적 역할을 규명하는 것을 목표로 했습니다. 생산적으로 이 연구는 miR-326-5p 상향 조절이 STAT3 억제를 통해 CI/RI를 완화하고 Mfn2 발현을 높임을 밝혔습니다.
먼저 miR-326-5p 발현이 체내 및 체외에서 CI/RI에서 감소함을 확인했습니다. 이후 일련의 실험을 통해 miR-326-5p 상향 조절이 신경세포 생존율과 미토콘드리아 기능을 향상시키고, Mfn2 발현을 높이며, 산화 스트레스와 세포자살을 억제함을 발견했습니다. 또한 쥐에서의 체내 실험이 CI/RI에서 복원된 miR-326-5p의 기능적 역할을 추가로 검증했습니다. 사실 높은 miR-326은 교모세포종(가장 흔한 뇌종양) 환자의 긴 전체 생존율과 상관관계가 있음이 입증되었습니다[24]. 또한 miR-326 발현이 파킨슨병에서 감소하며 miR-326이 도파민 신경세포 세포자살을 억제하고 염증 반응을 감소시킬 수 있음이 추가로 입증되었습니다[25]. 그 외에도 miR-326-5p 감소가 심근경색 과정에서 내피 전구 세포에서 나타나며, 과발현 내피 전구 세포 도입이 심장 기능 회복을 촉진할 수 있습니다[11]. miR-326 상향 조절이 알츠하이머병 쥐에서 행동 기능을 개선하고 신경세포 생존율을 높이며 신경세포 세포자살을 억제함을 보여준 연구도 있습니다[26]. 또한 miR-326 모방에 의한 miR-326 상향 조절이 파킨슨병에서 도파민 신경세포의 유도성 산화질소 합성효소를 억제할 수 있음이 기록되었습니다[27].
이 연구에서 STAT3가 miR-326-5p의 표적 유전자임을 발견했습니다. 선행 연구에 의해 인간 자궁내막암 줄기세포에서 STAT3 발현이 miR-326에 의해 음성 조절됨이 제시되었습니다[28]. 현재 연구에서 CI/RI에서 STAT3 발현이 증가함을 측정했습니다. 현재 I/R 손상과 OGD가 STAT3 발현 증가를 유도함이 밝혀졌습니다[29]. 흥미롭게도 STAT3 mRNA 발현이 I/R 동물에서 증가 경향을 보입니다[30]. 또한 CI/RI에서 STAT3 단백질 발현이 상향 조절됨이 보고되었습니다[31]. 다음으로 우리 연구는 STAT3 하향 조절이 CI/RI 쥐와 OGD 처리된 신경세포에 치료 효과가 있음을 밝혔습니다. 한 연구에 의해 miR-326 유도가 JAK/STAT3 경로 불활성화를 통해 산화 스트레스를 억제함이 결론지어졌습니다[32]. 또한 JAK2/STAT3 경로 억제가 CI/RI에서 산화 스트레스 손상에 유익함이 확인되었습니다[31]. 게다가 JAK/STAT3 경로 녹다운이 허혈성 뇌 손상에서 세포 생존율을 높이고 산화 스트레스와 신경세포 세포자살을 감소시킴이 확인되었습니다[33]. 최근 JAK/STAT3 신호 전달 경로 억제가 심근 I/R 손상에서 심근경색을 완화함이 목격되었습니다[34]. 고갈된 STAT3가 백질 손상 쥐에서 신경세포 세포자살을 약화시킴이 입증되었습니다[35]. 게다가 JAK2/STAT3 억제에 의해 신경세포 세포자살 억제와 뇌경색 크기 완화가 CI/RI 쥐에서 기인함이 밝혀졌습니다[36].
마지막으로 miR-326-5p와 STAT3가 Mfn2 발현에 미치는 영향에 초점을 맞췄고, CI/RI 쥐와 OGD 처리된 신경세포에서 감소된 Mfn2 수준이 miR-326-5p 복원 또는 STAT3 침묵으로 높일 수 있음을 발견했습니다. 선행 연구에 의해 Mfn2가 재관류 후기 단계에서 감소하고 Mfn2 발현 저하가 자가포식체 형성과 자가포식체-라이소좀 융합 억제를 통해 CI/RI를 악화시킴이 기록되었습니다[18]. 또한 Mfn2가 노인 간세포에서 I/R 손상에서 감소 심지어 소실됨이 시사되었습니다[37]. 그러나 miR-326-5p와 STAT3의 Mfn2 조절 메커니즘을 논의한 연구는 거의 없습니다.
결론
일반적으로 이 연구는 CI/RI에서 miR-326-5p 상향 조절이 STAT3 하향 조절을 통해 신경세포 세포자살을 억제하고, 신경세포 병리적 손상을 완화하며, Mfn2 발현을 증가시키는 메커니즘을 규명했습니다. 이 연구는 CI/RI에서 miR-326-5p와 STAT3의 잠재적 메커니즘을 업데이트할 수 있습니다. 그러나 CI/RI에서 분자 메커니즘의 추가 발전을 위해 더 많은 연구가 여전히 필요합니다.